

【微信扫码关注核序】
前言:
病毒捕食是驱动微生物进化、塑造地球生物地球化学循环的重要力量。相较于细菌与噬菌体、真核生物与真核病毒之间的大量研究,古菌(archaea)作为一类既存在于极端生境、也广泛分布在土壤海洋的生命类群,它们与古菌病毒(archaeal virus)之间的分子互作,仍然是领域的缺口。
古菌最独特的一点在于信息处理系统的镶嵌特征:复制、转录、翻译的核心蛋白和真核生物同源;但转录本经常无 5’帽子、存在多顺反子、无先导转录本,转录和翻译又像细菌一样发生偶联。因此古菌病毒需要同时应对类似真核、又类似细菌的宿主环境。
过去对古菌病毒的研究大多聚焦基因组、电镜结构,只有少数研究利用转录组学系统解析古菌宿主‑病毒基因表达,然而宿主与病毒基因组内仍有大量功能未知基因:古菌基因组平均约 40% 基因功能未注释,转录组研究中的病毒基因组更是有 40‑80% 基因功能不明。
Jocelyne DiRuggiero 课题组选取嗜盐古菌 Haloferax gibbonsii(Hg)和它的有尾病毒 HFTV1 作为模式体系,结合翻译组学技术 Ribo‑seq,高时间分辨率追踪整个感染周期,同时解析转录与翻译的全局动态,以揭示古菌病毒和宿主之间的博弈机制。
01 感染全程:病毒与宿主同时维持活跃翻译
为了解析 HFTV1 与宿主 Hg 的基因表达动态,研究人员在完整感染周期同步开展 Ribo‑seq 与 mRNA‑seq,同时检测 mRNA 丰度以及 mRNA 上的核糖体结合密度。
感染条件:42 ℃,MOI=10,宿主 Hg 在感染后3.5‑4 h 发生裂解;所有样本采集均在裂解前完成。
时间点:T0、5、15、30、60、180 min(3 个生物学重复),补充时间点 T150、T200(临近裂解)。
随着感染时间推移,测序数据显示一个清晰趋势:病毒 HFTV1 的 mRNA 和核糖体结合读码占比持续升高,宿主 Hg 的占比逐步下降。到感染后 180 分钟,如果只看细胞里的转录水平,75% 都是宿主古菌的 mRNA,病毒 mRNA只占 25%;但在翻译层面,可要是看真正正在干活翻译蛋白的核糖体,宿主、病毒核糖体结合的 mRNA 各占约 50%。这说明即使临近细胞裂解,宿主和病毒都依旧保持活跃的翻译过程。
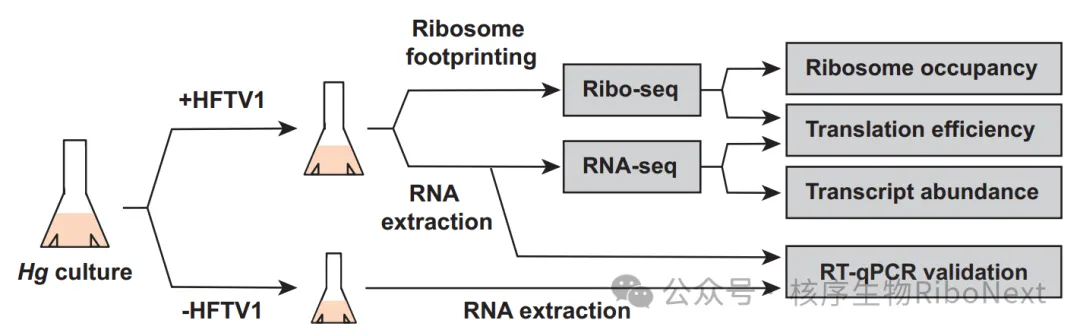
整套时序实验设计示意图
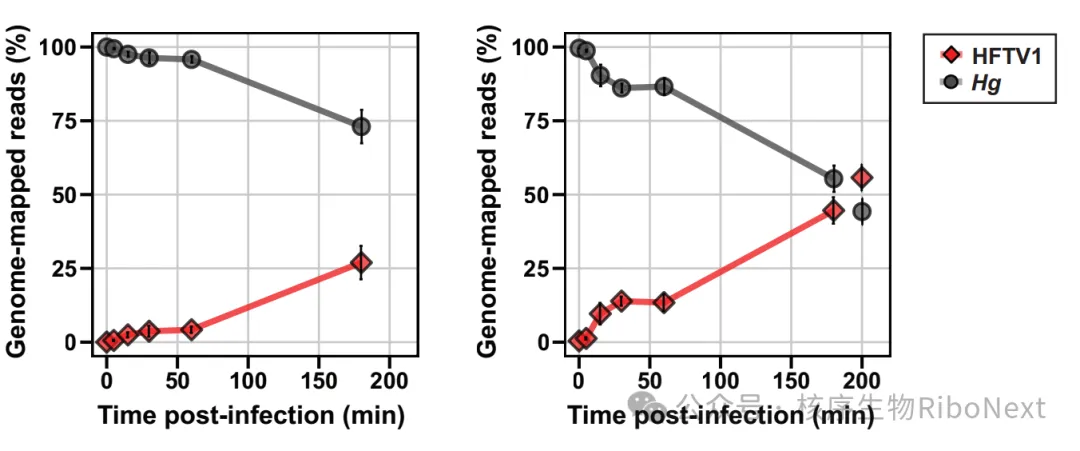
RNA‑seq (左)、Ribo‑seq (右) 中比对到宿主 Hg 或病毒 HFTV1 的基因组读段占比
通过统计学筛选,一共鉴定 1721 个存在差异核糖体密度的宿主基因,占全部宿主基因的 44%,而所有病毒基因均发生翻译水平的显著改变。同时研究者也观察到,少数病毒基因,核糖体密度远高于 mRNA 丰度,这也直接证明了转录后调控,参与病毒基因的表达控制。
02 同一个基因,翻译出两种功能蛋白
研究人员在众多受转录后调控的基因中,发现 mRNA-seq 与 Ribo-seq 在病毒晚期基因 gp17 表现出了明显的差异。这个基因原本被注释为 P2 噬菌体来源的 “支架‑蛋白酶融合蛋白”。但 Ribo‑seq 的覆盖信号却出现异常:gp17 基因的 3’端区域核糖体结合信号,远远强于 5’端。
结合高石蒜碱 HHT 捕获翻译起始位点的实验证实,这个基因拥有两个独立翻译起始位点。
全长起始位点:翻译完整蛋白,N 端结构域(NTD)与 C 端结构域(CTD),发挥前头部蛋白酶功能。文中命名为 gp17。
框内内部起始位点:直接从基因中间的起始密码子启动翻译,仅表达 CTD,作为衣壳支架蛋白。文中命名为 gp17.5。
在被感染的细胞内部,C 端产物丰度是 N 端的 7.8 倍;但组装完成的成熟病毒颗粒中,两者丰度接近 1:1。该嵌套基因组织模式见于 λ 噬菌体、HSV‑1 疱疹病毒,为双链 DNA 有尾病毒共同起源假说提供新证据。但 HFTV1 并不依靠 RNA 茎环结构、Shine‑Dalgarno 序列去调控内部起始,它的调控机制和已知病毒完全不一样,依旧是待解谜题。
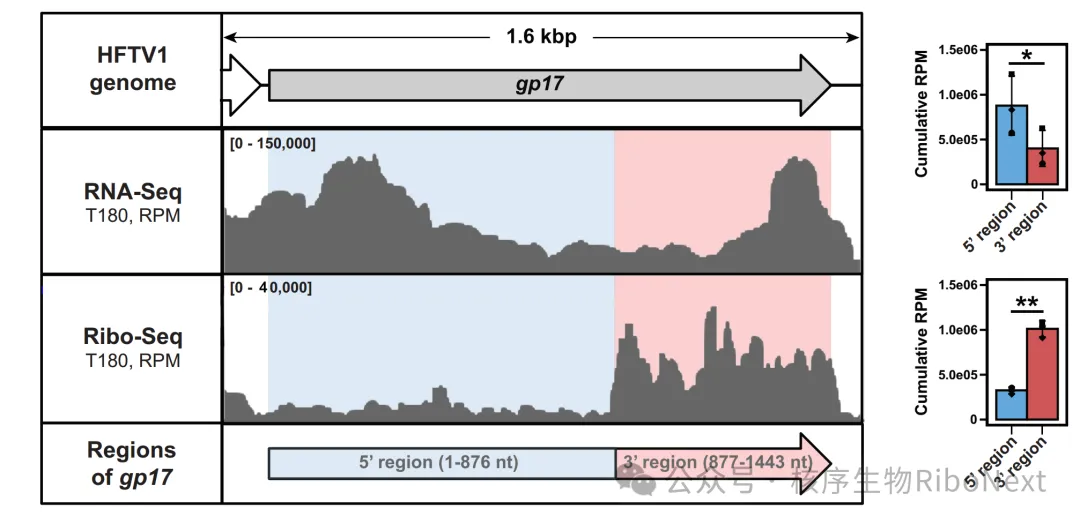
T180 时间点 gp17 基因 RNA‑seq 与 Ribo‑seq 覆盖度(RPM,每百万读段);
红色代表 5' 区或 NTD,蓝色代表 3' 区或 CTD
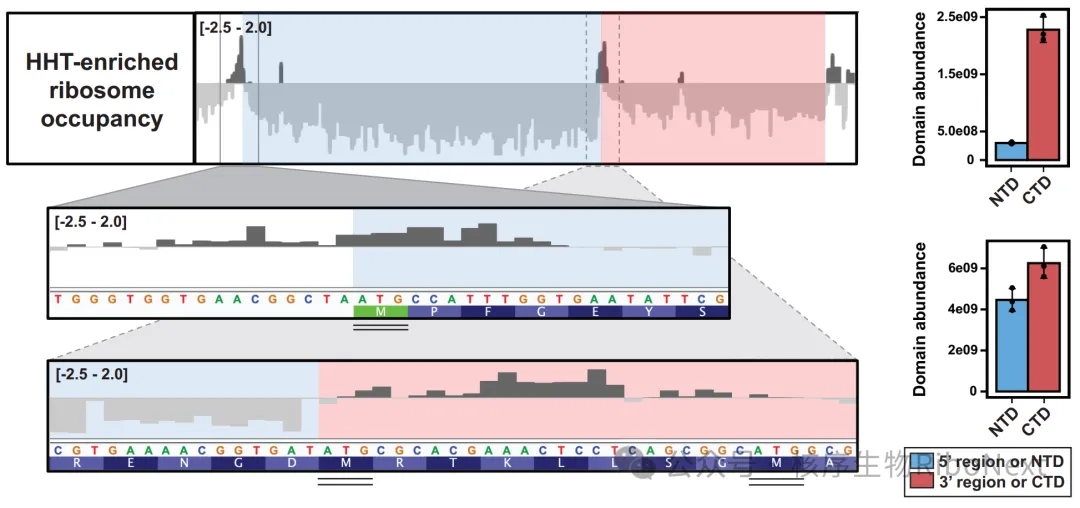
HHT 处理 Ribo‑seq 数据;
放大显示 gp17 两处核糖体富集峰:
标准翻译起始位点,以及内部翻译起始位点;AUG 起始密码子下划线标出。
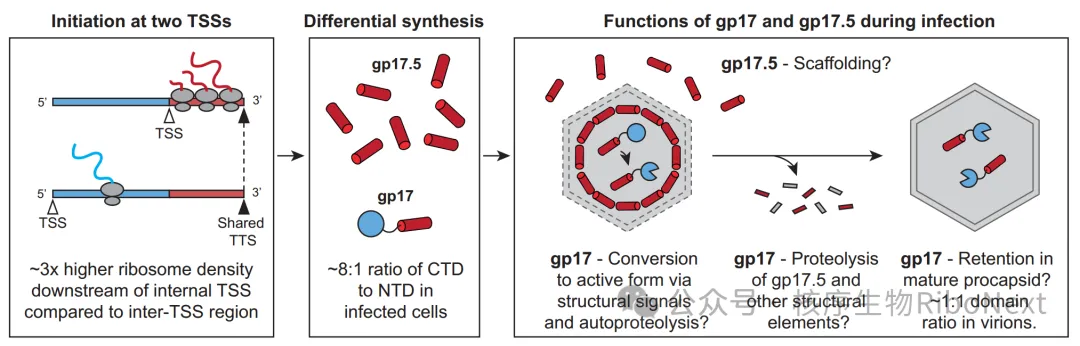
gp17 前头部蛋白酶、gp17.5 衣壳支架蛋白翻译调控、蛋白比例与生理功能模型
03病毒 tRNA:跳出密码子补偿的传统认知
研究人员发现 HFTV1 基因组编码一个病毒 tRNA(vtRNA^Thr_CGU),预测识别苏氨酸 ACG 密码子,序列内部还带有古菌 tRNA 典型的 5nt 内含子。
按照传统认知,病毒编码 tRNA,大多是为了弥补病毒与宿主之间密码子使用偏好的差异。 但研究人员在比对了基因组密码子使用频率后发现 HFTV1 和宿主 Hg 的 ACG 密码子使用并没有明显差异。
随后,研究人员通过蔗糖梯度分离核糖体组分并结合 Northern blot 结果观察到,在感染后期vtRNA^Thr_CGU 可以和宿主的单核糖体、多聚核糖体复合体共沉降,证明病毒 tRNA 在细胞内与宿主核糖体结合。
vtRNA 的功能并非简单补偿密码子偏好。仍待实验确认该 tRNA 是否发生氨酰化、是否直接参与解码,或者优先翻译特定病毒转录本。它的加工成熟、修饰状态、生理功能需要进一步实验解析。
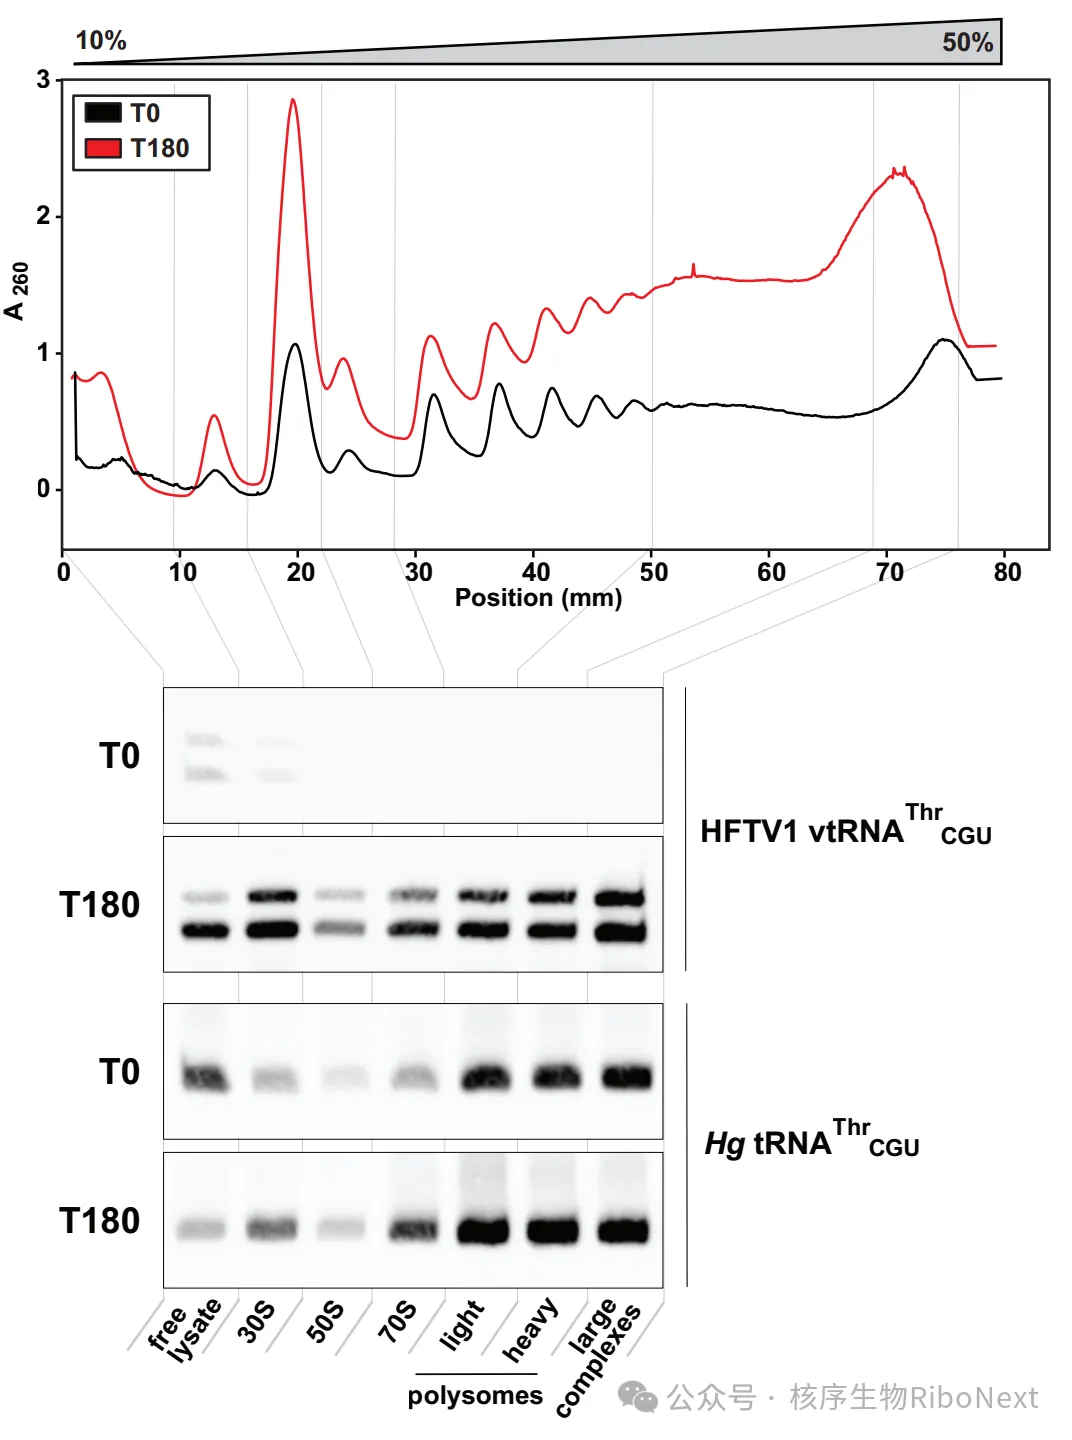
10‑50% 蔗糖梯度多聚核糖体轮廓;
对应组分 Northern 印迹,证明 vtRNA 与核糖体组分共沉降
04 宿主防御不靠 CRISPR,Tafi 菌毛‑生物膜成为主力
大家熟知,古菌拥有 CRISPR‑Cas、毒素‑抗毒素等经典抗病毒系统。但在 HFTV1 感染 Hg 这套体系中,经典防御系统并没有成为主力。
通过基因时序聚类,研究人员发现一套从未被注释的、Tat 通路依赖的菌毛系统 Tafi,和病毒早期基因协同上调。实验证实,病毒感染会显著促进宿主生物膜的形成,推测 Tafi 介导的生物膜,是该宿主主要的抗病毒防御手段。
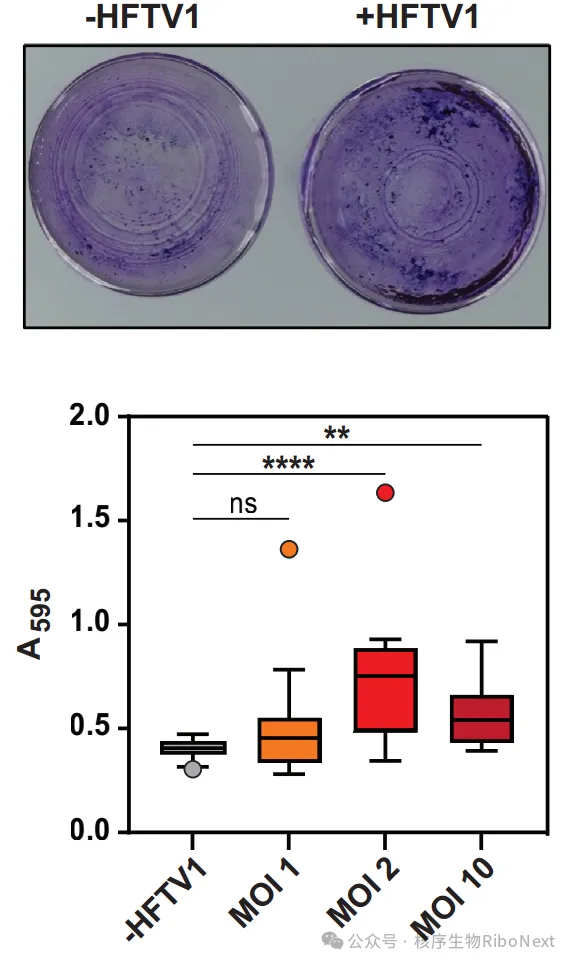
结晶紫生物膜染色实验:HFTV1 感染会显著提升宿主生物膜形成能力
结合全部结果,作者提出完整感染模型:
感染早期:病毒完成吸附,宿主启动 Tafi‑生物膜防御通路;
感染中期:宿主代谢系统尚能运转,病毒开启基因组复制与大量蛋白合成,vtRNA 结合宿主核糖体;
感染后期:宿主信息加工系统逐步衰退,细胞出现氨基酸饥饿,病毒完成衣壳组装;
最终宿主细胞裂解,释放子代病毒颗粒。
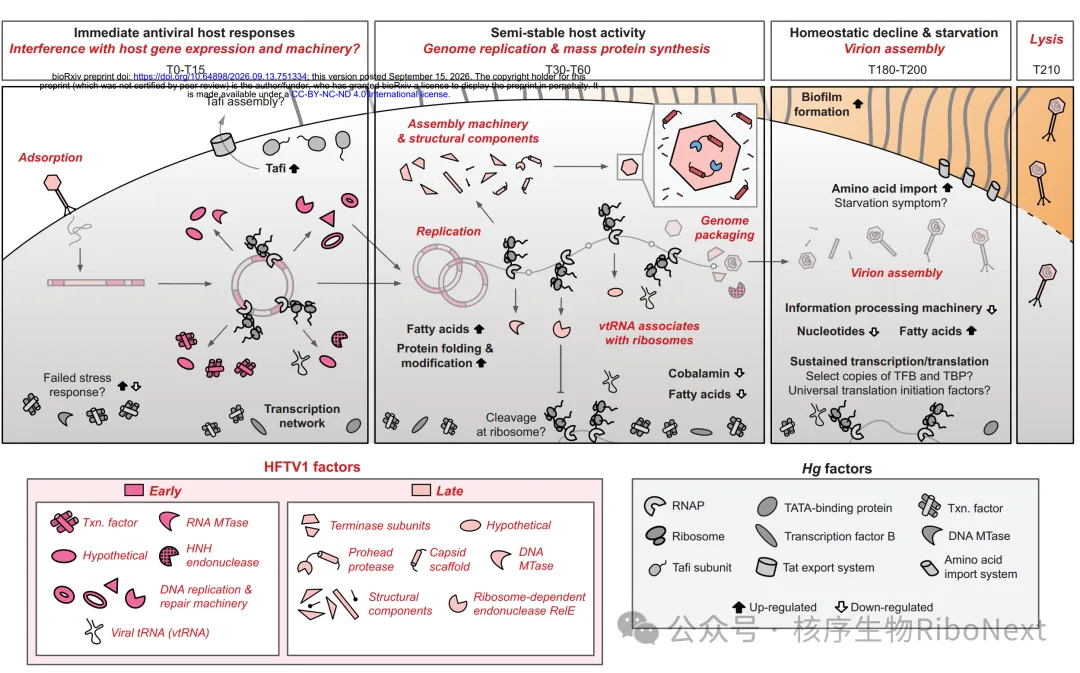
HFTV1 病毒感染周期模型
结语
总的来说,这项工作依靠高时间分辨率的 Ribo‑seq 与 mRNA‑seq,捕获古菌病毒感染体内全局转录与翻译动态。为古菌宿主‑病毒互作领域,开辟转录后调控这一尚未被充分探索的研究方向。
原文链接:
https://www.biorxiv.org/content/10.64898/2026.09.13.751334v1
邮箱:hr@ribonext.com
地址:
总公司:浙江省杭州市滨江区长河街道滨安路688号5幢6层616室
宁波分:浙江省宁波市鄞州区首南街道都市工业园区A区202室
深圳分:深圳市罗湖区桂园街道红村社区宝安南路2001号中政华庭3067
电话:17506717396
Copyright © 2025 核序(宁波)生物科技有限公司