

【微信扫码关注核序】
前言:
核糖体沿着 mRNA 翻译蛋白并不是一路畅通无阻。当翻译受阻,核糖体发生停滞(ribosome stalling),后续核糖体接踵而上,遇见前面停下的核糖体,就会产生翻译界的「交通堵车」——核糖体碰撞(ribosome collision)。
在动物与酵母中,核糖体碰撞是重要质控信号,可以触发 No‑Go Decay(无义衰变),降解异常 mRNA。但在植物当中有一个巨大疑问:只要核糖体发生停滞,就一定会降解 mRNA 吗?已有研究表明 uORF、逆境胁迫都能够造成核糖体暂停,但植物如何区分 “功能性暂停” 和 “需要清除的危险停滞”,一直悬而未决。
2026年9月8日,Julia Bailey‑Serres 课题组在PNAS上发表论文,优化实验体系,同时使用Ribo-seq(后续文中写为单核糖体测序,Monosome-seq)、Disome-seq 双核糖体测序,搭配 5′P‑degradome‑seq 降解组测序,在单密码子分辨率下解析拟南芥和玉米中核糖体停滞的效应,回答什么样的核糖体停滞,会开启 mRNA 的降解命运。
01植物核糖体的不同状态
为解析植物核糖体停滞,研究人员首先优化了实验条件,植物内源核酸酶背景更高,作者做 RNase‑I 梯度滴定优化,找到适配拟南芥幼苗的不完全酶切条件,以更好地保留碰撞在一起的两个核糖体不被切开。
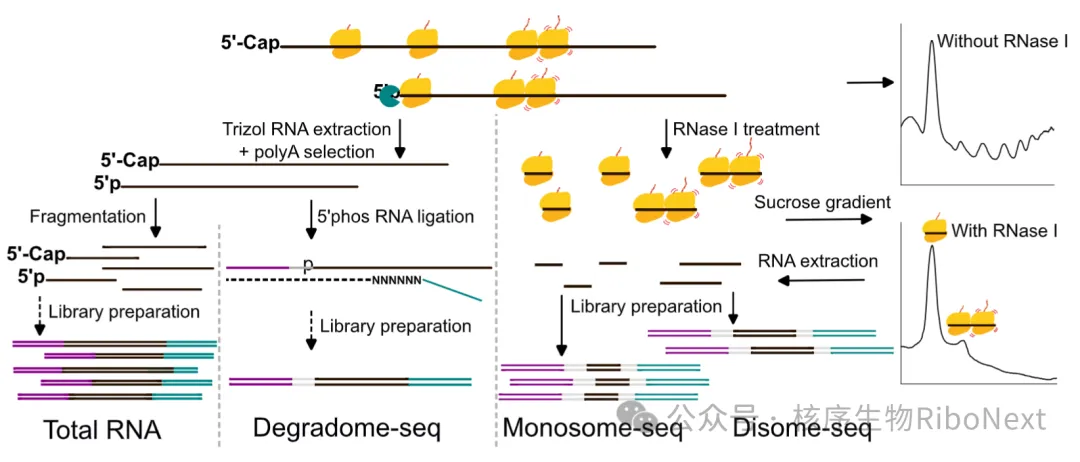
Monosome-seq、Disome-seq、
Degradome-seq 的实验流程图
对经过 2 小时缺氧处理的拟南芥幼苗开展 Monosome-seq 与 Disome-seq,识别出了两类单核糖体构象、以及三类双核糖体碰撞间距。
其中 A 位点空位(Vacant A‑site)构象的核糖体保护的 mRNA 足迹(RPF)短,A 位点没有 tRNA,说明此时翻译卡住等待 tRNA 或者释放因子,这种构象的核糖体在终止密码子处大量富集;A 位点占据(Occupied A‑site)构象的核糖体 RPF 长,A 位点结合氨酰‑tRNA,正常翻译延伸状态。
而碰撞的双核糖体则划分为紧密堆叠(0密码子间隔)、间隔1个密码子、间隔2个密码子三种碰撞间距;停滞的核糖体又可以是 A 位点空位/占据构象,总共 6 种核糖体组合构型。
核糖体 “堵车” 程度不一样,构象不一样,则会导致完全不同的下游生理后果。
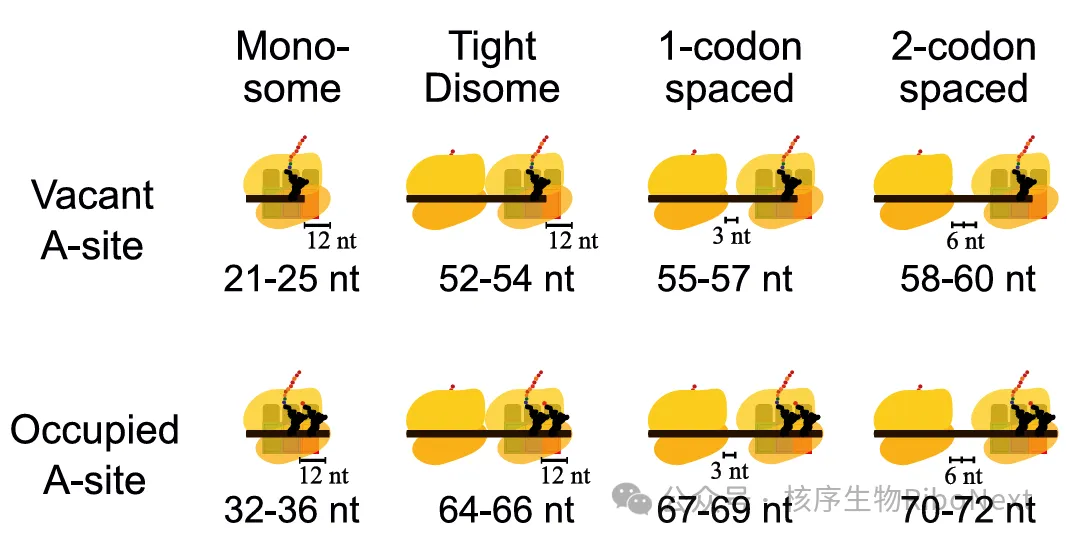
采用蔗糖梯度分级分离法,从全脑匀浆中分离沉淀与Fration 5/6
02 同样是核糖体停滞,命运却大相径庭
不是所有核糖体停滞都会触发 mRNA 降解!研究人员将目光放在此前已有报道的双脯氨酸 di‑Pro 停滞,该过程依赖 eIF5A 催化二脯氨酸肽键的形成,文中发现其以 A 位点空位核糖体为主。同时在常氧、缺氧条件下,di‑Pro 停滞位点没有升高降解组 5′P 信号,说明只是功能性暂停,不启动共翻译降解。
以多泛素基因 UBQ10 为例,保守 PPDQQ 序列周期性发生核糖体停滞;研究者推测这个暂停的生理意义,是给共翻译蛋白加工留出时间,方便去泛素化酶 DUB 切割泛素单体。
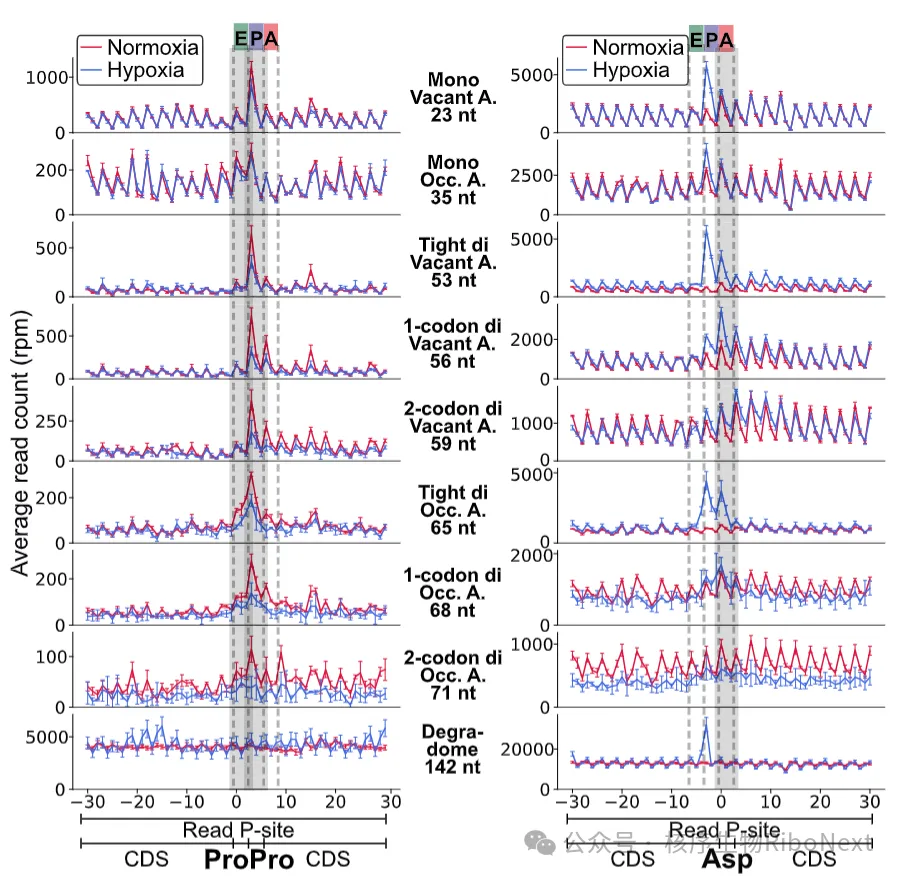
di‑Pro 与 Asp 密码子周围单核糖体 / 双核糖体 / 降解组 reads 分布
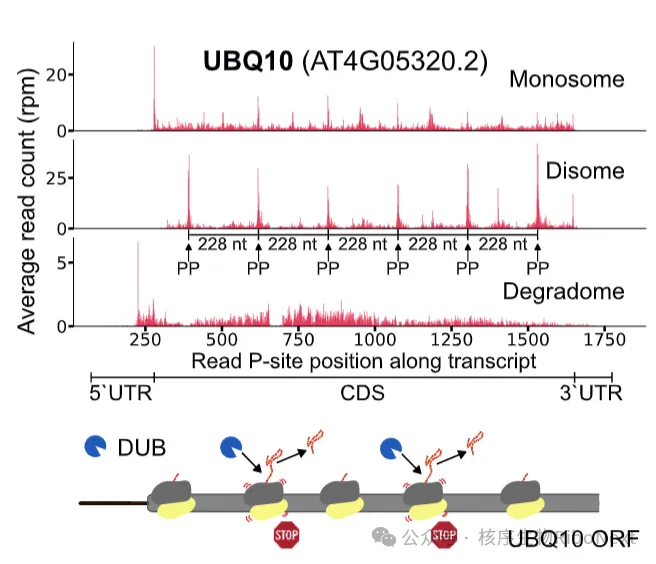
UBQ10 基因上核糖体 P-site RPM 分布图,
黑色箭头指的是 di-Pro 停滞事件
然而,在短暂缺氧胁迫下,拟南芥细胞天冬氨酸含量下降,导致 Asp‑tRNA 供给不足。这使得核糖体停留在 Asp 密码子,大量形成 A 位点空位、紧密堆叠碰撞组合构型的双核糖体。这类碰撞位点和 5′P 降解峰显著共现,介导 mRNA 的共翻译降解。PAL1 是缺氧诱导天冬氨酸停滞的典型例子。
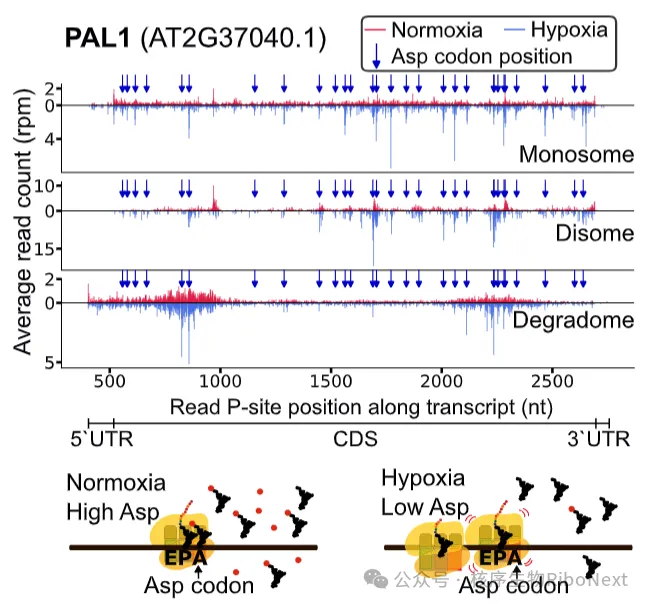
PAL1 基因上核糖体 P-site RPM 分布图,
蓝色箭头指的是缺氧诱导的 Asp 停滞事件
03 缺氧全局多组学:逆境下 mRNA 的三种调控策略
研究人员进一步结合转录组、翻译组、双核糖体测序、降解组多组学联合聚类,面对低氧胁迫,植物体内的 mRNA 分化成 3 种命运:
①缺氧核心响应基因(HRG):高通量周转模式
mRNA 转录上调,翻译活跃,同时降解水平也显著升高。一边合成一边降解,这种 “高流转” 模式,能够帮助植物在胁迫解除之后,快速清除胁迫响应转录本。
②细胞壁、木质素合成等高耗能基因(Cluster5):被核糖体碰撞清除
缺氧能量不足,这类高耗能通路转录本丰度下降;同时双核糖体信号、降解组信号同步升高。这证明核糖体紧密碰撞直接驱动 mRNA 降解,关闭耗能通路。
③光合、核糖体蛋白 RP 基因:被细胞保护,拒绝降解
缺氧时核糖体从 mRNA 上脱离翻译暂停,但 mRNA 本身不会被降解;转录本被封存保护。一旦恢复氧气,就可以迅速重启翻译,是植物的 “应急储备策略”。
因此,相关性分析表明,比起单纯核糖体密度,双核糖体(核糖体碰撞)丰度,更能反映 mRNA 发生共翻译降解的潜力。
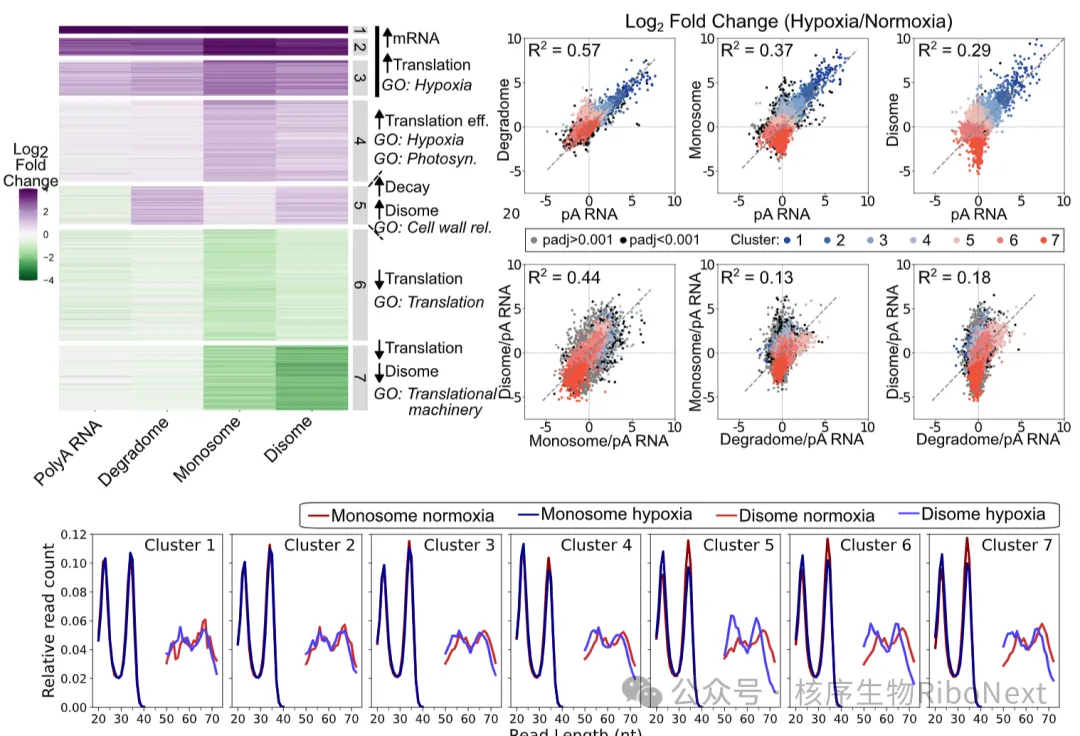
缺氧条件下,胁迫诱导 mRNA 以及部分光合、生长相关转录本会发生共翻译 mRNA 降解
04 跨物种视角:CPuORF 保守肽上游开放阅读框,停滞机制的保守与分化
接下来研究人员探究肽基转移酶中心构象(A 位点空位/占据)、特定密码子慢解码(起始、终止、氨基酸密码子)以及 uORF 翻译,在拟南芥、单子叶模式植物玉米之间是否保守。
结果显示,玉米与拟南芥单核糖体、双核糖体大量模式保守;细微差异可能来自组织、发育阶段,也可能来自物种特异性密码子使用偏好、翻译机器差异。
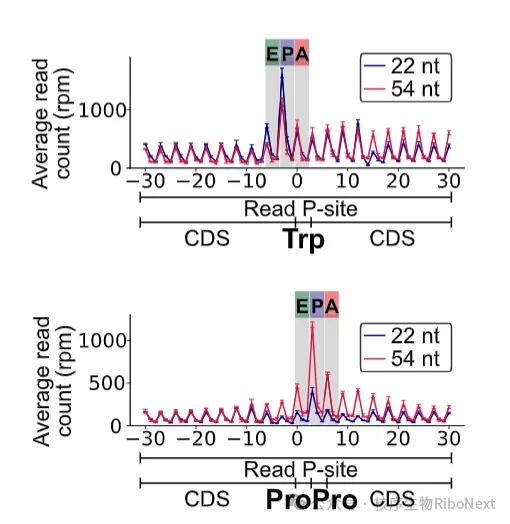
玉米中与拟南芥相似的 di-Pro 停滞事件和缺氧诱导的 Asp 停滞事件
保守肽上游开放阅读框(CPuORF)是植物一类重要翻译调控元件,已知能够造成核糖体停滞抑制下游主基因翻译。通过拟南芥、玉米对比发现:
①很多 CPuORF 终止密码子位置发生核糖体停滞,该停滞既可以抑制下游翻译,部分同时触发 mRNA 共翻译降解;
②部分 CPuORF 存在两套停滞位点:一套跨物种保守的肽序列介导延伸停滞;另一套为双子叶特有、终止密码子位置的停滞;
③缺氧胁迫可以解除部分 CPuORF 造成的翻译抑制,释放下游主 ORF 翻译。
因此,CPuORF 不只是简单 “刹车翻译”,还联动 mRNA 降解,并且在单子叶、双子叶演化中发生调控分化。
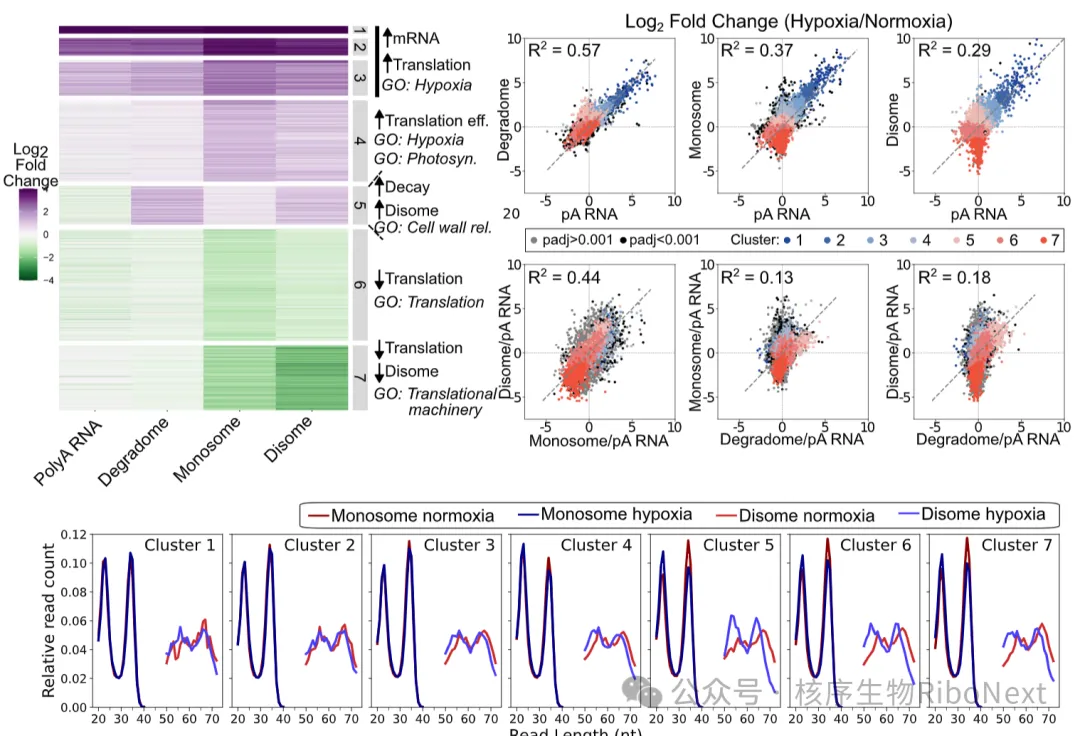
缺氧条件下,胁迫诱导 mRNA 以及部分光合、生长相关转录本会发生共翻译 mRNA 降解
结语
整体来说,这篇工作把核糖体构象、密码子停滞、逆境响应、mRNA 降解联系到一起,让我们重新认识到细胞氨基酸供给,不只是影响翻译速度,还直接决定 mRNA 的稳定性。
同时这项工作也留下了待解答的问题:植物缺少动物 NGD 通路关键内切酶 Cue2,植物究竟靠什么分子识别不同类型核糖体碰撞,选择性启动 mRNA 降解,还待遗传实验进一步验证。
原文链接:
https://www.pnas.org/doi/10.1073/pnas.2617633123
邮箱:hr@ribonext.com
地址:
总公司:浙江省杭州市滨江区长河街道滨安路688号5幢6层616室
宁波分:浙江省宁波市鄞州区首南街道都市工业园区A区202室
深圳分:深圳市罗湖区桂园街道红村社区宝安南路2001号中政华庭3067
电话:17506717396
Copyright © 2025 核序(宁波)生物科技有限公司